La sintesi dei nucleotidi: vie de novo e di recupero all'Università
Documento dall'Università sulla sintesi dei nucleotidi. Il Pdf esplora le vie de novo e di recupero per purine e pirimidine, dettagliando i passaggi enzimatici e la regolazione allosterica. Il Pdf, utile per lo studio della Biologia a livello universitario, illustra la formazione di IMP e UMP e il ruolo della ribonucleotide reduttasi nella produzione di desossiribonucleotidi.
Mostra di più11 pagine

Visualizza gratis il Pdf completo
Registrati per accedere all’intero documento e trasformarlo con l’AI.
Anteprima
Biochimica e biologia molecolare
Biochimica e biologia molecolare, Lezione 29, 16/11/2023 Prof.ssa Maria Letizia Penolazzi
La sintesi dei nucleotidi
La sintesi dei nucleotidi avviene in due modalità: Ex novo partendo da precursori semplici, oppure de novo tramite recupero di basi libere e resti di altri nucleotidi degradati (questa via richiede molti passaggi enzimatici); i nucleotidi a base purinica hanno come precursore comune l'aminoacido glicina, mentre quelli pirimidinici hanno l'aspartato. Le basi azotate sono molecole non particolarmente idrofile, questo le rende complesse da sintetizzare; perciò, le cellule "adottano" degli stratagemmi per la loro sintesi, in particolare il costruire la base azotata a posteriori della sintesi del ribosio (nella sua forma fosforibosil pirofosfato). Nella cellula non esistono riserve di nucleotidi, alcuni di questi possono fare da inibitori o attivatori allosterici enzimatici e ciò determina che la loro concentrazione sia finemente controllata, ma allo stesso tempo si necessita che ce ne siano a sufficienza per permettere le funzioni vitali della cellula.
Sintesi dei nucleotidi purinici
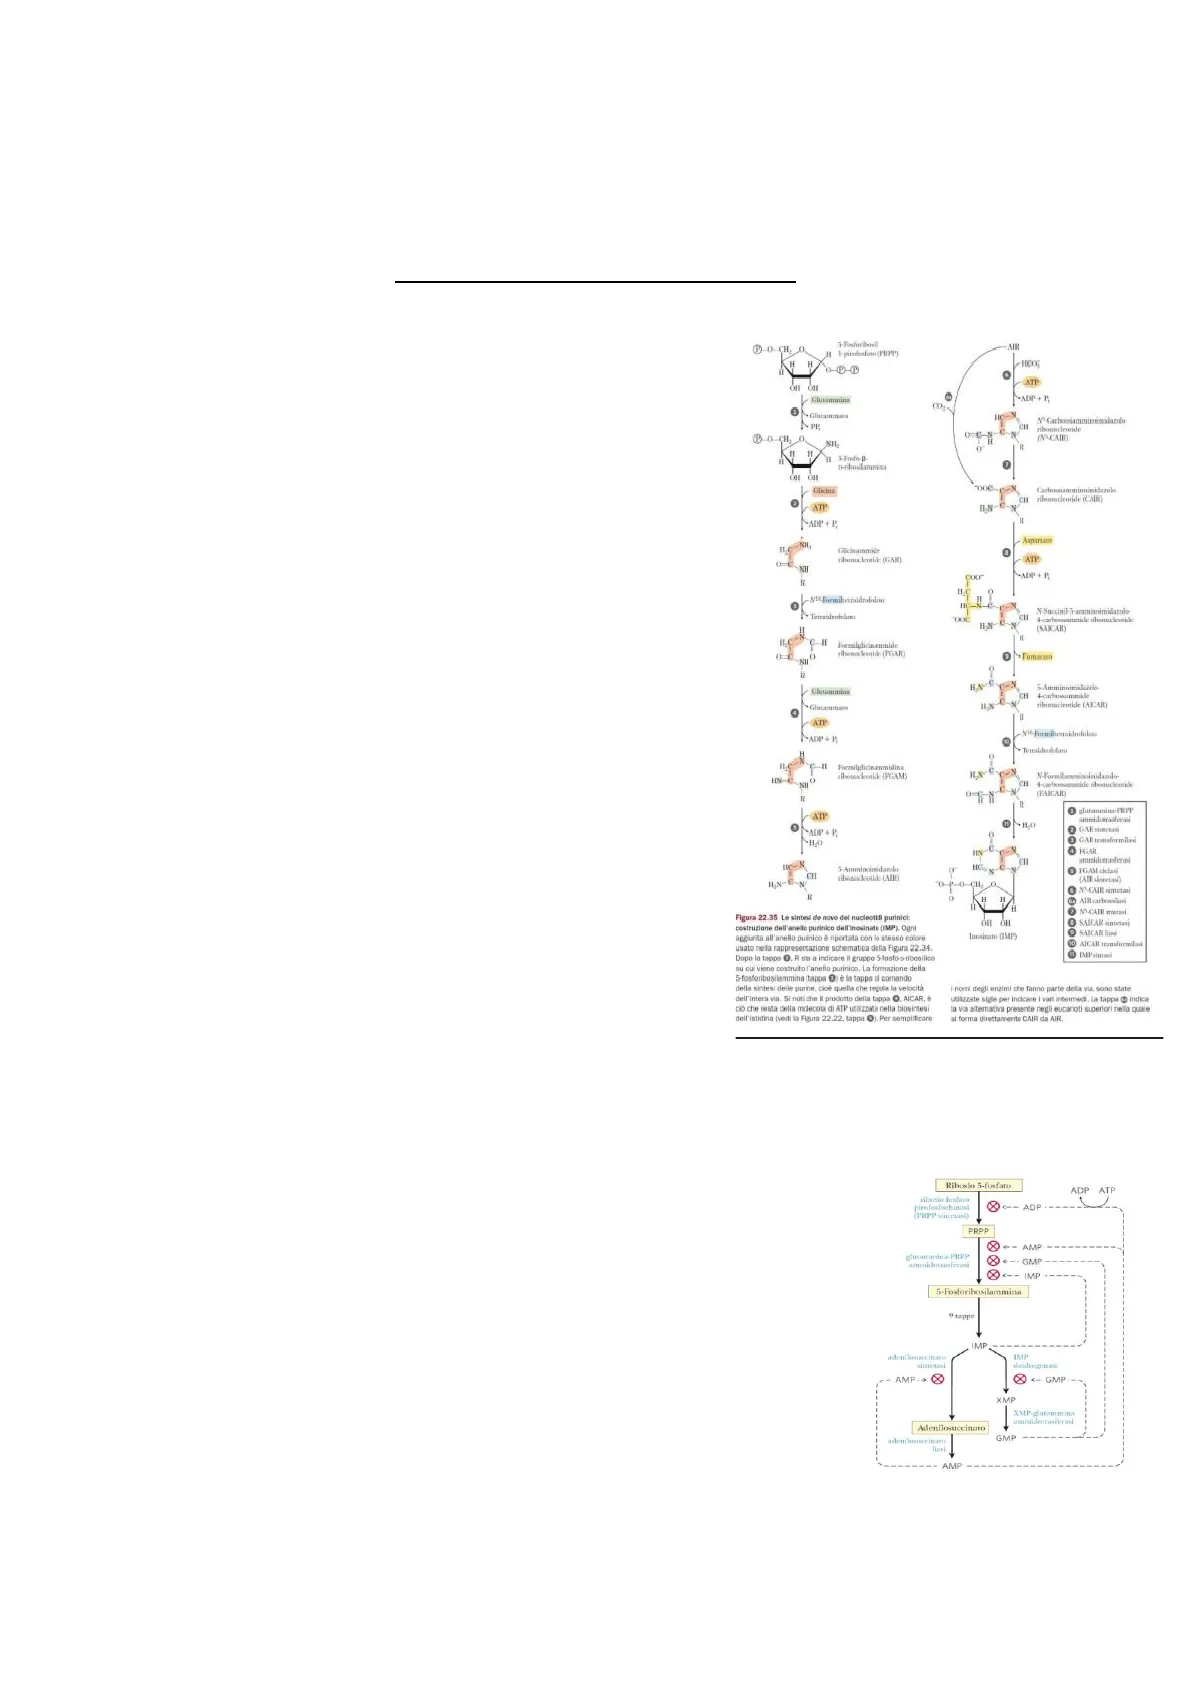
La sintesi dei nucleotidi purinici: La prima molecola che si viene a costituire dalla sintesi di nucleotidi purinici è IMP (la base azotata è ipoxantina). In seguito alla generazione di fosforibosil pirofosfato, una glutammina cede un gruppo aminico, liberando glutammato grazie all'enzima glutammina fosforibosil pirofosfato aminotransferasi (è una tappa regolatoria). Le successive 4 tappe concorrono alla creazione della porzione pentagonale della base azotata, unendo glicina, un gruppo formil ed un gruppo aminico. Da qui si forma un intermedio di reazione AIR, che riceve un ulteriore gruppo amminico (da aspartato che diventa fumarato). Per finire l'aggiunta di un gruppo formil e l'eliminazione di una molecola d'acqua, permette la ciclizzazione dell'anello esagonale e l'IMP è completo.
Ribosio 5-fosfato ADP ATP ribosio fosfato pirofosfochinasi (PRPP sintetasi) <-- ADP PRPP 8 +- AMP glutammina-PRPP ammidotrasferasi 8 + -- GMP <-- IMP 5-Fosforibosilammina 9 tappe IMF adenilosuccinato IMP sintetasi deidrogenasi AMP-> 8 <- GMP XMP XMP-glutammina ammidotrasferasi Adenilosuccinato GMP flash - AMP = = 1 11 3-Foto-B. OH OH Carbonsiamminimidranlo CH rilsomdeorde (CAIN) 0 ATP ADP + F, Aspartame NH. O ATP ADP+ 1 0 N Succinil-3-amminnimidarlo 4-carlaroomsmidde ribonuclecockde (SAJCAR) = CHI Formsilglicinammide rilsidentide (PGAR) 0 Fumarses Glutaminina CH 4-carbonoummåle ribonucicutide (AIAI0) = ATP -ADP + 1; H Formilglicinammidina ribotcleotide (PGAM) N-Formilaninoimidamler HN-C .0 CH -N (FAICAR) ATP E GAR simesani O GAR ironsformilasi O FAR ammidomudenial O FGAM cidal (AIR skthetask) O NºCAIR sintetasi NO-CAIR metan O SAICAR sintesani O MAICAR Tani lassinato (IM1'> 00 AICAR transformilani @ IMP vintaxi Figura 22.35 Le sintesi de novo del nucleotidi purinici: costruzione dell'anello purinico dell'inosinato (IMP), Ogni aggiunta all'anello purinico è riportata con lo stesso colore usato nella rappresentazione schematica della Figura 22.34. Dopo la tappe O. R sta a indicare il gruppo 5 fosfo-o ribosilico su cui viene costruito l'anello purinico. La formazione della 5-fosforibosilammina [tappa O) è la tappa di comando della sintesi delle purine, cioè quella che regola la velocità dell'intera via. Si noti che il prodotto della tappa O. AICAR, è ciò che resta della molecola di ATP utilizzata nella biosintesi dell'istidina (vedi la Figura 22.22, tappa O). Per semplificare 3-Finforbesi 0-0-0 ATP .ADP+ 1; 0 - Glutammien CH ribonucleoride (N-CAIIO 0 tribodammisa Genammide ribnoix kotide: (GAM) CH N 3-Amminoimikunlo N 0 -ADP + P. CH 0 CH 5 Ammincimidazolo abonondeotide (AIR) HAN- "O P-O-CH_O H H TH OH OH I nomi degli enzimi che fanno parte della via, sono state utilizzate sigle per indicare i vari intermedi. La tappa @ indica la via alternativa presente negli eucarioti superiori nella quale si forma direttamente CAIR da AIR. 1 adenilosuccinato = O dutanmissIRPP HDall'IMP si sintetizzano AMP e GMP, i quali controllano le reciproche vie di sintesi trasversalmente, che permettono un rapporto di 6:1, in favore dell'ATP. Ognuna delle tre molecole ha la capacità di regolare la propria sintesi, di regolare a monte la produzione di IMP, e solo ATP, riesce ad intervenire sulla PRPP sintetasi interrompendo tutta la catena di reazioni. Questi sistemi sono più comuni nelle vie anaboliche poiché richiedono la presenza di tutti i componenti nelle giuste quantità. Le vie di recupero funzionano per mezzo di due enzimi: adenina fosforibosil transferasi e ipoxantina-guanina fosforibosil transferasi; il primo attacca adenina a PRPP (creando ADP+pirofosfato), il secondo associa ipoxantina o guanina al PRPP (generando IMP e GMP). Il deficit di HGPRT è determinato dalla sindrome di Lesch Nyhan e l'eccessiva produzione di acido urico (dato dalla degradazione delle purine, visto il PRPP non può essere impiegato nelle vie di recupero continua ad innescare la sintesi di nuovi nucleotidi e le basi invece di essere riutilizzate vengono distrutte) causa anomalie neurologiche molto gravi.
Sintesi dei nucleotidi pirimidinici
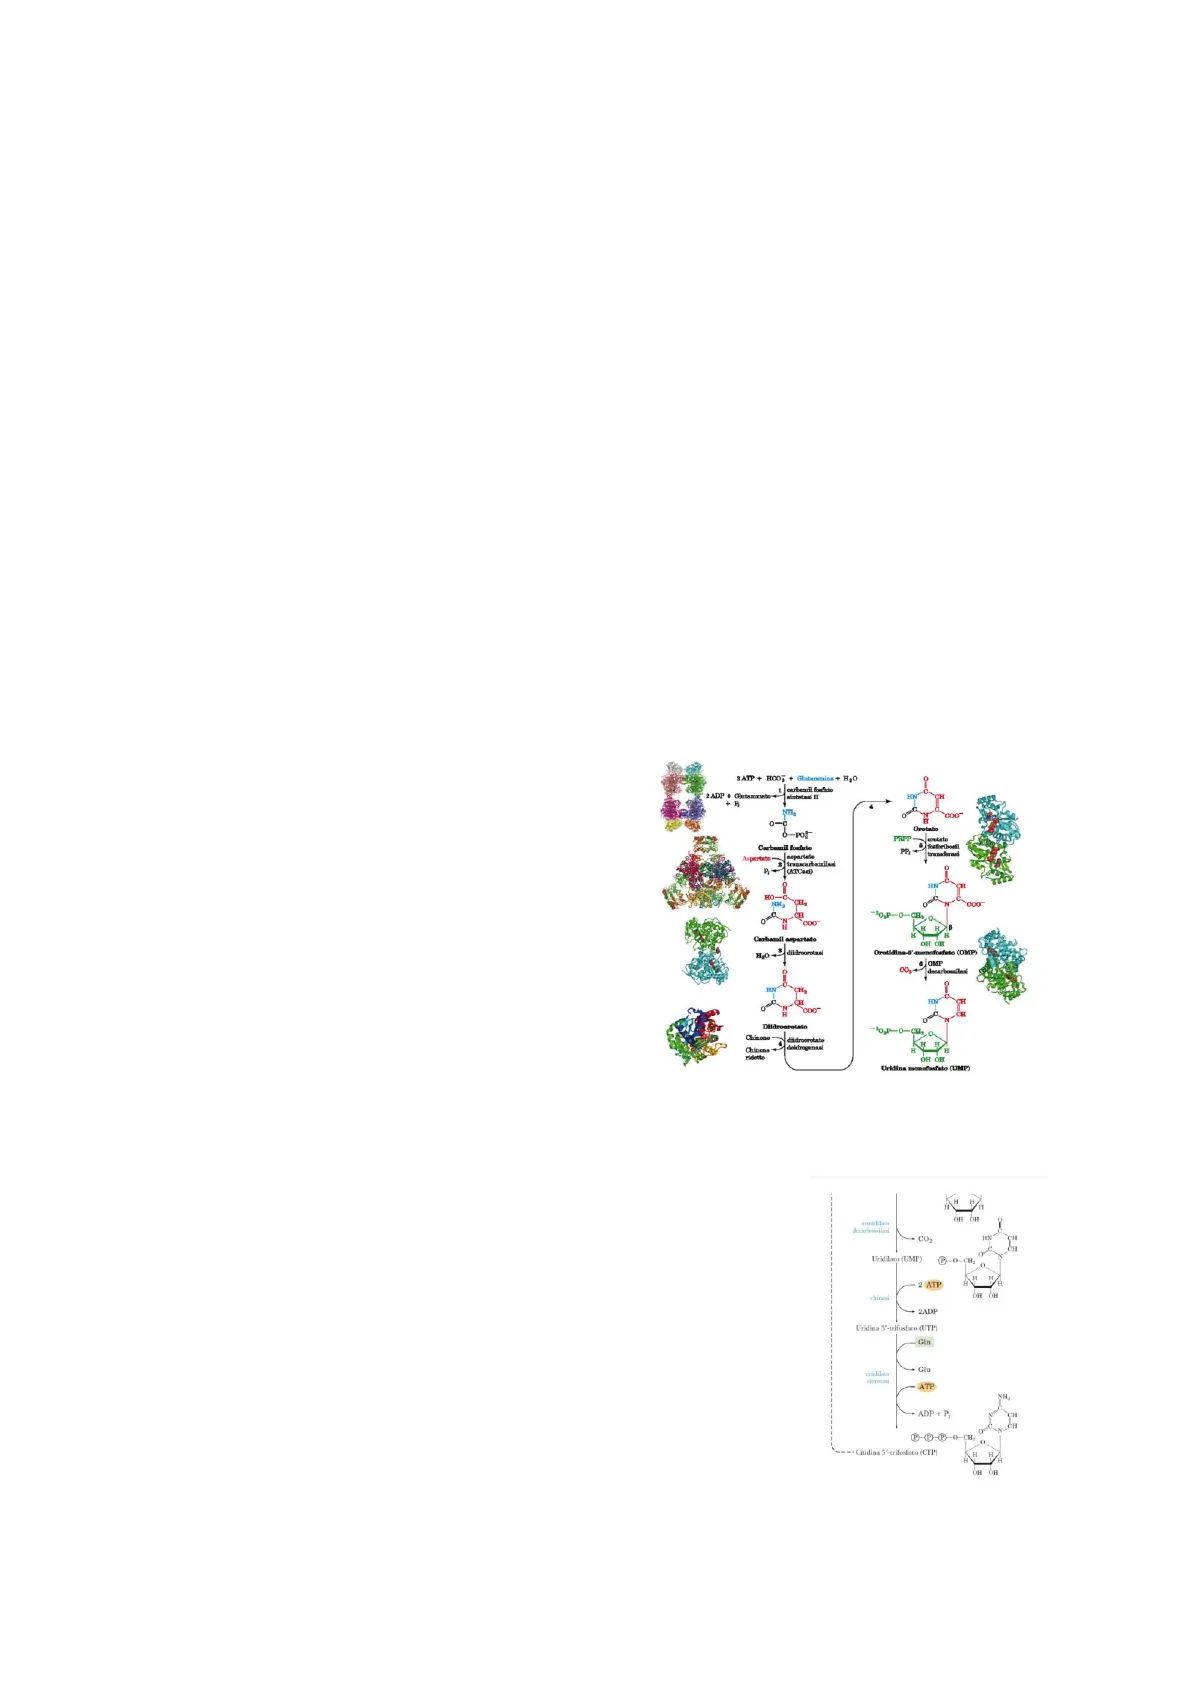
La sintesi dei nucleotidi pirimidinici La porzione più consistente dell'anello viene fornita dall'aspartato che viene legato dal carbamil fosfato (questo che è la stessa molecola di partenza del ciclo dell'urea, viene sintetizzato dalla carbamil fosfato sintetasi II la quale è simile alla variante del ciclo dell'urea ma lavora nel citosol piuttosto che nel mitocondrio). La rimozione di una molecola d'acqua, posteriormente all'intervento dell'aspartato, permette la ciclizzazione; successivamente interagisce con il PRPP e una decarbossilazione fa raggiungere l'ultimo stadio ovvero UMP (uridina monofosfato).
2 ATP + HCO" + Glutammina + H2O 2 ADP + Glutammato- 1 carbemil foafsto sintetasi II + F 0 0 Orotato 0-POR PRPP- Carbamil fosfato PP- Aspartate- sapartata 2 transcarbamilasi P (ATCan) HO-O NH "CH 200 CH ""O.P-O-CHO H Carbamil aspartato HO-2 3 diidroorotani Orotidina &' monofosfato (OMP) OMP C decarbonilasi CH CH 0 Dildrooretato FO,P-O-CH 1.0 H H H OH OH Uridina monofosfato (UMP) A differenza dei nucleotidi purinici, i pirimidinici hanno bisogno di arrivare nello stadio a tre fosfati prima di "cambiare" la base azotata. La formazione della forma trifosfato dipende interamente dall'intervento di ATP, che perciò necessita di essere sempre presenti in concentrazione molto superiore rispetto agli altri nucleotidi nella cellula. UTP con l'attacco di glutammina diventa CTP (citidina trifosfato). UMP regola solamente la sintesi di sé stesso alla fine della catena di reazioni in modo da permettere ai vari intermezzi di essere presenti per la cellula al bisogno.
OH OH omocidilato decarbossiland H Uridilato (UMP) ®-OCH 0 HH 2 ATP H chinasi OH OH + 2ADP Uridina 5'-trifosfato (UTP) Gin ciridilato sintetasi ATP NH, ADP + P; CH CH P-P-P-O-CH HH H -- Citidina 5'-trifosfato (CTP) OH OH 2 Chinone- Chinone+ ridotto diidroorotato deidrogenasi eretato 5 fosforibonll H - CO2 Glu
Sintesi dei deossiribonucleotidi
La sintesi dei deossiribonucleotidi La timina la vediamo come base azotata solo nel DNA, quindi in questo caso, dato che in natura non si vanno a generare nucleotidi che nella forma ribonucleotidica non hanno collocazione biologica, si predilige la sola sintesi del deossiribonucleotide, diversamente dalle altre basi azotate che possono essere derivare sia da ribonucleotidi che da deossiribonucleotidi, a seconda dell'acido nucleico che devono comporre.
Grupo oxo O H H 1 I C-H / C Grupo metil 3 5 2 6 C C. 1 -H O N Grupo oxo H
Ribonucleotide Reduttasi
Ribonucleotide reduttasi A questo punto interviene il particolare Complesso Enzimatico della Ribonucleotide Reduttasi, che ha la funzione di andare a generare, per quanto possibile nelle concentrazioni adeguate, i desossiribonucleotidi quando c'è bisogno, ovvero principalmente nella Fase S del Ciclo Cellulare (perchè di fatto dei desossiribonucleotidi nelle altre fasi non ce n'è bisogno, la loro quantità sintetizzata sarà quindi decisamente più bassa rispetto a quella dei ribonucleotidi). Un'altra particolarità di questo enzima è che agisce partendo dai ribonucleotidi nella forma Difosfato, quindi anche il suo substrato è particolare. A questo punto si ha la problematica di riuscire a capire come arrivare ad altri nucleotidi che sono dATP, dCTP, dGTP. Ricordiamo che i desossiribonucleotidi servono principalmente nella fase S, ovvero la fase di replicazione del codice genetico, quindi deve esserci un sistema che permetta l'arrivo alla cellula di tutti i desossiribonucleotidi necessari al momento opportuno. Qualora ciò non fosse possibile verranno a presentarsi enormi problemi al momento della sintesi del DNA: immaginiamo che durante la sintesi si abbia, per qualche motivo, una sorta di temporeggiamento nel momento in cui deve arrivare il deossiribonucleotide con la base azotata complementare a quella dell'emielica che fa stampo; capiamo che, in termini di fedeltà relativa alla replicazione dell'informazione del DNA parentale, si avrebbe una problematica aggiuntiva a quelle che già in condizioni normali possono incorrere, dovute ad esempio all'attività della DNA polimerasi. In questi casi avremo una carenza di uno dei deossiribonucleotidi nel sito di replicazione, questo sarebbe pessimo, al punto da determinare l'insorgenza di una serie di mutazioni incompatibili con la vita della cellula. Per spiegare come funziona il complesso enzimatico della Ribonucleotide Reduttasi si fa riferimento al modello studiato in Escherichia Coli, diverso da quello umano, ma con funzionamento analogo.
3 C. H NInnanzitutto la Ribonucleotide Reduttasi presenta intrinsecamente un sistema basato su una serie di passaggi che sfruttano un Ponte Disolfuro presente nel sito catalitico. Una fase importantissima dell'attività dell'enzima coinvolge la Tioredossina, una proteina presente a livello della Ribonucleotide Reduttasi, necessaria per ripristinare quella che è la presenza dei gruppi -SH come tali piuttosto che come Ponti Disolfuro. Fondamentalmente la Tioredossina sostiene questo tipo di trasformazione, grazie all'azione della Tioredossina Reduttasi, finalizzata non solo all'attività della Tioredossina, ma anche al sostegno della Ribonucleotide Reduttasi. La Ribonucleotide Reduttasi è un enzima tetramerico con 2 Subunità alfa e 2 Subunità beta. Le Subunità alfa accolgono due punti specifici di regolazione allosterica, un sito di attivazione (activity site) e un sito di specificità. Sotto le Subunità alfa, le due Subunità Beta accolgono invece tutti gli altri punti essenziali, che servono per sostenere l'attività a livello del sito catalitico, che si trova tra la Subunità alfa e la Subunità Beta. Le subunità alfa hanno funzione principalmente regolativa, le subunità beta garantiscono l'attività catalitica, il sito attivo si trova tra le subunità alfa e beta. Perché è indispensabile che ci siano due siti di interazione con le Subunità con funzione regolativa (quelli sulle subunità alfa)? Perché è necessario che i desossiribonucleotidi siano prodotti nelle giuste quantità, per non avere eccedenze e/o mancanze. Il sito principale di regolazione interagisce con ATP o deossi ATP, che rappresentano il "sistema di switch-on/ switch-off". Grosse quantità di ATP attivano lo switch on, mentre grosse quantità di deossi ATP attivano lo switch off (perché ho abbastanza desossiribonucleotidi in giro per cui non serve produrne altri).
Siti regolatori e substrati
Siti regolatori Effettori allosterici Sito di specificità del substrato ATP, dATP, dGTP ATTP Principale sito di regolazione ATP. dATP Subunità & Subunità & Substrati Sito attivo HS HS SH CDP HX UDP GDP Subunità B P (a) Typ231 Tipli Tyr356 B 0 Modello dell'a2B2 (b) Via del radicale (c) 4 ADP SH
Non hai trovato quello che cercavi?
Esplora altri argomenti nella Algor library o crea direttamente i tuoi materiali con l’AI.
