Principi generali di fisiologia endocrina: ormoni e regolazione della crescita
Documento di Università su Principi Generali di Fisiologia Endocrina. Il Pdf, utile per lo studio universitario di Biologia, esplora la classificazione degli ormoni, i loro meccanismi di trasporto e azione, e la regolazione della crescita con focus su GH e IGF-1.
Mostra di più46 pagine

Visualizza gratis il Pdf completo
Registrati per accedere all’intero documento e trasformarlo con l’AI.
Anteprima
Principi generali di fisiologia endocrina
Gli ormoni sono sostanze chimiche secrete da cellule specifiche direttamente nel circolo sanguigno che agiscono su specifiche cellule bersaglio a distanza. Le funzioni sono, in generale, di regolazione di processi a lungo termine: riproduzione, regolazione della proliferazione e differenziazione cellulare, omeostasi chimica e fisica dell'organismo, regolazione del metabolismo energetico; tuttavia il sistema endocrino è anche in grado di rispondere a variazioni dell'ambiente interno o esterno con meccanismi a breve termine. Si devono distinguere dalla funzione endocrina:
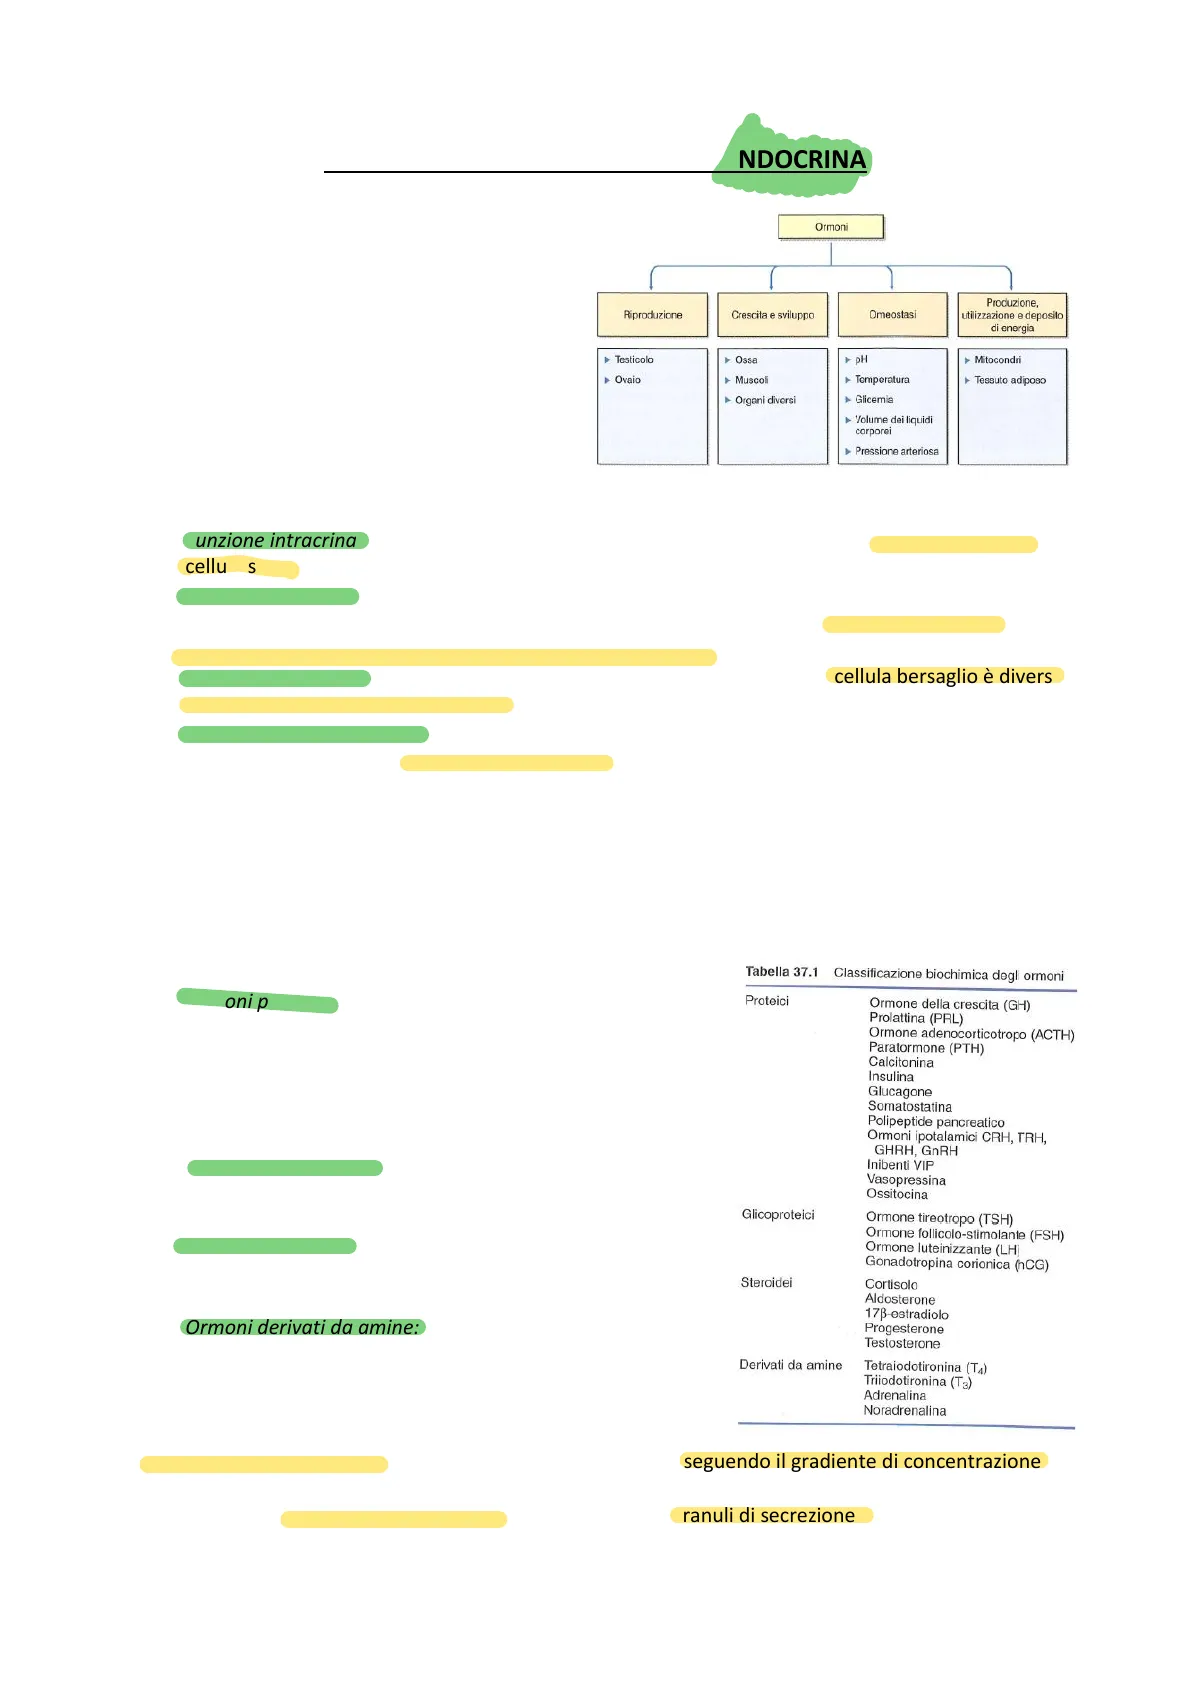
Ormoni Riproduzione Crescita e sviluppo Omeostasi Produzione, utilizzazione e deposito di energia Testicolo ৳ Ossa + PH Mitocondri Ovaio Muscoli Temperatura Tessuto adiposo Organi diversi Glicemia Volume dei liquidi corporei Pressione arteriosa
- Funzione intracrina: mediatori chimici agiscono sulla cellula che li ha prodotti senza uscire dalla cellula stessa.
- Funzione autocrina: trasmissione di un segnale a corto raggio, il cui trasporto non è mediato dal circolo sanguigno, ma dalla diffusione attraverso il liquido interstiziale. La cellula bersaglio è la stessa che produce il mediatore, oppure una cellula simile.
- Funzione paracrina: come la autocrina si basa su processi diffusivi, ma la cellula bersaglio è diversa dalla cellula che secerne il mediatore.
- Funzione neuroendocrina: trasmissione di una molecola da un neurone attraverso l'assone fino al sangue per raggiungere un bersaglio a distanza
Tuttavia, queste funzioni differenti possono interagire: ad esempio la produzione ormonale endocrina di una ghiandola può essere regolata da segnali di tipo neuroendocrino (asse ipotalamo-ipofisario), ma anche di tipo paracrino come nel caso dell'azione di citochine che stimolano la produzione ormonale, in modo da assicurare una risposta coordinata tra sistema endocrino e immunitario nella risposta allo stress.
Classificazione e biosintesi degli ormoni
Gli ormoni possono essere classificati in base alla natura chimica in:
- Ormoni proteici: costituiti da aminoacidi. Vengono sintetizzati nel RER sotto forma di preproormone, un precursore contenente un peptide segnale, che in seguito a rimaneggiamenti nel Golgi viene convertito in proormone e infine secreto come ormone attraverso granuli di secrezione.
- Ormoni glicoproteici: costituiti da aminoacidi e residui saccaridici, che vengono aggiunti in seguito a rimaneggiamenti nell'apparato del Golgi
- Ormoni steroidei: derivati del colesterolo. Possono essere ulteriormente suddivisi in mineralcorticoidi, glicocorticoidi, androgeni ed estrogeni.
- Ormoni derivati da amine: come gli ormoni tiroidei, sintetizzati a partire dalla tirosina, e le catecolamine, a partire dalla fenilalanina.
Tabella 37.1 Classificazione biochimica degli ormoni
Proteici Ormone della crescita (GH) Prolattina (PRL) Ormone adenocorticotropo (ACTH) Paratormone (PTH) Calcitonina Insulina Glucagone Somatostatina Polipeptide pancreatico Ormoni ipotalamici CRH, TRH, GHRH, GnRH Inibenti VIP Vasopressina Ossitocina Glicoproteici Ormone tireotropo (TSH) Ormone follicolo-stimolante (FSH) Ormone luteinizzante (LH) Gonadotropina corionica (hCG) Steroidei Cortisolo Aldosterone 17ß-estradiolo Progesterone Testosterone Derivati da amine Tetraiodotironina (TA) Triiodotironina (T3) Adrenalina Noradrenalina
Secrezione ormonale
Gli ormoni tiroidei e steroidei lasciano la cellula semplicemente seguendo il gradiente di concentrazione, non vengono depositati all'interno di essa. Al contrario ormoni proteici e catecolamine sono depositati in granuli di secrezione che si formano a partire dal trans-Golgi network (TGN) e la cui fusione con la membrana è mediata da un aumento di calcio 1citosolico. Può essere costitutiva, quindi caratterizzata da una secrezione rapida e continua (emivita di circa 20 minuti), limitata solamente dalla velocità della sintesi proteica, oppure regolata, permettendo la formazione di vescicole più dense contenenti l'ormone a concentrazioni maggiori. I granuli contengono anche altre proteine fra cui proteasi responsabili del clivaggio dei precursori immaturi e le granine: glicoproteine acide, stabili al calore e importanti per la formazione dei granuli, come la cromogranina A, B e secretogranine I e II; questi hanno diverse funzioni, possono agevolare la formazione dei precursori ormonali o possono essere essi stessi precursori di polipeptidi bioattivi.
Trasporto ematico degli ormoni
Gli ormoni secreti viaggiano nel plasma in piccola parte liberi, oppure legati a proteine di trasporto specifiche o aspecifiche: le prime hanno alta affinità e bassa capacità per l'ormone, le seconde l'opposto. Se viaggiano liberi l'effetto è rapido ma l'emivita della molecola è breve, al contrario le proteine di trasporto allungano l'emivita (riducendo ad esempio la quantità di ormone filtrata a livello renale) e regolano la quantità di ormone che raggiunge le cellule bersaglio determinando un effetto a lungo termine. Un aumento della concentrazione di proteine carrier può determinare, sequestrando gli ormoni circolanti, dei circuiti di feedback negativo che aumentano la quota libera dell'ormone: questo accade ad esempio con T4 e TBG (thyroid hormone-binding protein) durante la gravidanza.
Meccanismo d'azione ormonale
Gli ormoni agiscono sulle cellule bersaglio attraverso una serie di reazioni intracellulari, che avvengono in seguito al legame tra ormone e recettore. Generalmente ormoni proteici e catecolamine si legano a recettori sul versante esterno della membrana, gli ormoni tiroidei e steroidei a recettori intracellulari. Il legame ormone-recettore è caratterizzato da elevata affinità e specificità, anche se alcuni recettori possono legare ormoni diversi con affinità minore. L'affinità può essere espressa, all'equilibrio, attraverso la costante di associazione Ka= [RH] (RH= ormone legato a recettore, R= recettore, H=ormone) [H]x[R]
Recettori di membrana
Sono classificati in base a caratteristiche funzionali e strutturali:
- Recettori tirosinchinasici: sono caratterizzati da un dominio extracellulare che contiene il sito di legame, un dominio transmembrana e una porzione intracellulare con dominio catalitico tirosinchinasico. Ne esistono almeno cento diversi e fanno parte di questa famiglia i recettori per l'insulina, IGF-1, EGF e VEGF. Una volta avvenuto il legame tra ormone e recettore, viene stimolata l'attività tirosinchinasica che determina l'autofosforilazione di tre Tyr nell'ansa di attivazione, ciò determina un cambiamento conformazionale che facilita la transfosforilazione e la fosforilazione di altri substrati necessari per la trasduzione del segnale, che avviene tramite diverse cascate enzimatiche. Parallelamente viene stimolata l'endocitosi del recettore legante l'ormone e l'attivazione di fosfatasi, che determinano la desensibilizzazione della cellula bersaglio e permettono la formazione di un segnale transiente.
- Recettori serintreoninchinasici: hanno le stesse caratteristiche strutturali generali dei precedenti, ma il dominio catalitico ha attività diversa: permette di fosforilare residui di Ser e Thr su substrati proteici. Vi sono 7 recettori di tipo I (RI) e 5 di tipo II (RII). Quando avviene il legame si determina un'interazione fisica tra RI e RII, per cui RII attiva RI tramite fosforilazione. Fanno parte di questa categoria i recettori per fattori di rilascio (RF) e di inibizione (IF).
- Recettori guanilatociclasici: nella porzione intracellulare è presente un dominio con attività guanilatociclasica, quindi catalizza la formazione di cGMP che a sua volta attiva una PKG. Fanno parte di questa categoria i recettori per il peptide natriuretico atriale ANPR-A e ANPR-B.
- Recettori accoppiati a G protein (GPCR): codificati da una superfamiglia di geni molto conservati dal punto di vista evolutivo, presentano una struttura comune, con 7 alfa eliche inserite nella membrana. Tutti i GPCR agiscono da fattori di scambio di nucleotidi guanilici, nello stato attivato (recettore che lega l'ormone) viene indotto lo scambio del GDP con GTP, con attivazione della subunità a dal dimero By, entrambe le subunità regolano l'attività di effettori intracellulari che 2possono determinare effetti rapidi (contrazione muscolare, secrezione) oppure a lungo termine (regolazione dell'espressione genica). Fanno parte di questa superfamiglia recettori per ormoni glicoproteici (come FSH e LH e TSH), recettori per PTH, CRH, recettori delle catecolamine, glucagone. I recettori possono essere accoppiati a G stimolatorie Gs, attivatrici Gq o inibitrici Gi che sfruttano diversi effettori cellulari e diverse vie di segnalazione come quella del cAMP o della PLC. I GPCR possono esistere anche come complessi di omo- ed eterodimeri.
- Recettori delle citochine: Il meccanismo d'azione non è diverso da quello dei tirosinchinasici, ma a differenza di questi l'attività tirosinchinasica non è intrinseca al recettore, ma è dovuta alla presenza di una proteina associata JAK, la quale fosforila proteine STAT, che una volta attivate dimerizzano e agiscono da fattori trascrizionali nel nucleo. I recettori per GH, prolattina e leptina appartengono a questa famiglia.
Recettori intracellulari
Vengono anche definiti recettori nucleari in quanto una volta legato l'ormone agiscono sull'espressione genica, non implica necessariamente la localizzazione nucleare del recettore: il recettore per i glucocorticoidi, per esempio, si trova nel citosol e migra nel nucleo solo in seguito al legame con il ligando. Tutti questi recettori sono complessati con hsp90, che viene spiazzata dal legame con l'ormone, inoltre presentano domini comuni definiti da A a F, la cui struttura è importante perché determina la funzione dei vari recettori. Tra i domini C e D è presente il segnale di localizzazione nucleare, mentre nei domini D ed E si trova il dominio legante il ligando LBD e sequenze che inducono dimerizzazione e regolano la trascrizione genica. Il dominio C possiede sottodomini a dita di zinco che costituiscono il DNA-binding domain, o DBD, che lega sequenze HRE (hormone responsive element); molti recettori nucleari contattano gli HRE come dimeri. LBD e DBD sono piuttosto simili tra i diversi recettori, ma ovviamente sono specifici rispettivamente per ligando e sequenze riconosciute. Gli effetti possono essere svariati, ma i più comuni sono:
- Repressione della trascrizione mediata da recettore non legato all'ormone: il recettore inattivato, se ha localizzazione nucleare, si lega al DNA agendo da repressore: spegne il gene bersaglio reclutando corepressori e al contempo viene potenzialmente amplificato il segnale in caso di futuro legame con l'ormone.
- Attivazione della trascrizione mediata da ligando + recettore: il recettore attivato recluta GTF (fattori generali della trascrizione) e cofattori della RNA polimerasi II tramite il legame di questi con a eliche idrofobiche sul LBD.
- Regolazione negativa della trascrizione mediata da ligando + recettore: i meccanismi non sono completamente chiari, una delle ipotesi riguarda l'attivazione di istone deacetilasi HAT, altre prevedono la presenza di recettori nucleari che portano alla rimozione di coattivatori.
Catabolismo ormonale
- Recettore-mediato: il complesso ormone-recettore viene internalizzato con degradazione nei lisosomi
- Recettore-indipendente: l'ormone viene degradato da proteasi circolanti nel plasma o da enzimi associati alle membrane.
Regolazione della secrezione ormonale
La concentrazione di ormone circolante rappresenta il punto di equilibrio tra catabolismo e velocità di biosintesi e secrezione, essa è finemente regolata tramite meccanismi diversi. Il sistema ipotalamo- ipofisario rappresenta un importante esempio di meccanismi di regolazione, soprattutto di retroazione:
- Ansa corta di regolazione a feedback: il sistema portale ipotalamo-ipofisario facilita l'arrivo dei messaggeri ormonali dall'ipotalamo all'ipofisi anteriore, l'ormone ipofisario liberato in circolo può a sua volta agire sull'ipotalamo inibendo la produzione del fattore di rilascio corrispondente. 3
Non hai trovato quello che cercavi?
Esplora altri argomenti nella Algor library o crea direttamente i tuoi materiali con l’AI.
