Biotecnologie biomediche: lezione sugli animali transgenici
Slide di Università sulle Biotecnologie Biomediche e gli Animali Transgenici. Il Pdf esplora l'introduzione di geni estranei e i sistemi di espressione genica condizionale, come il sistema Cre/loxP, per la materia Biologia.
Mostra di più35 pagine

Visualizza gratis il Pdf completo
Registrati per accedere all’intero documento e trasformarlo con l’AI.
Anteprima
Biotecnologie Biomediche
Lezione XVI: Animali Transgenici
David Deen @ 2006
BIOTECNOLOGIE BIOMEDICHE
LEZIONE XVI
TRANSGENIC ANIMALS
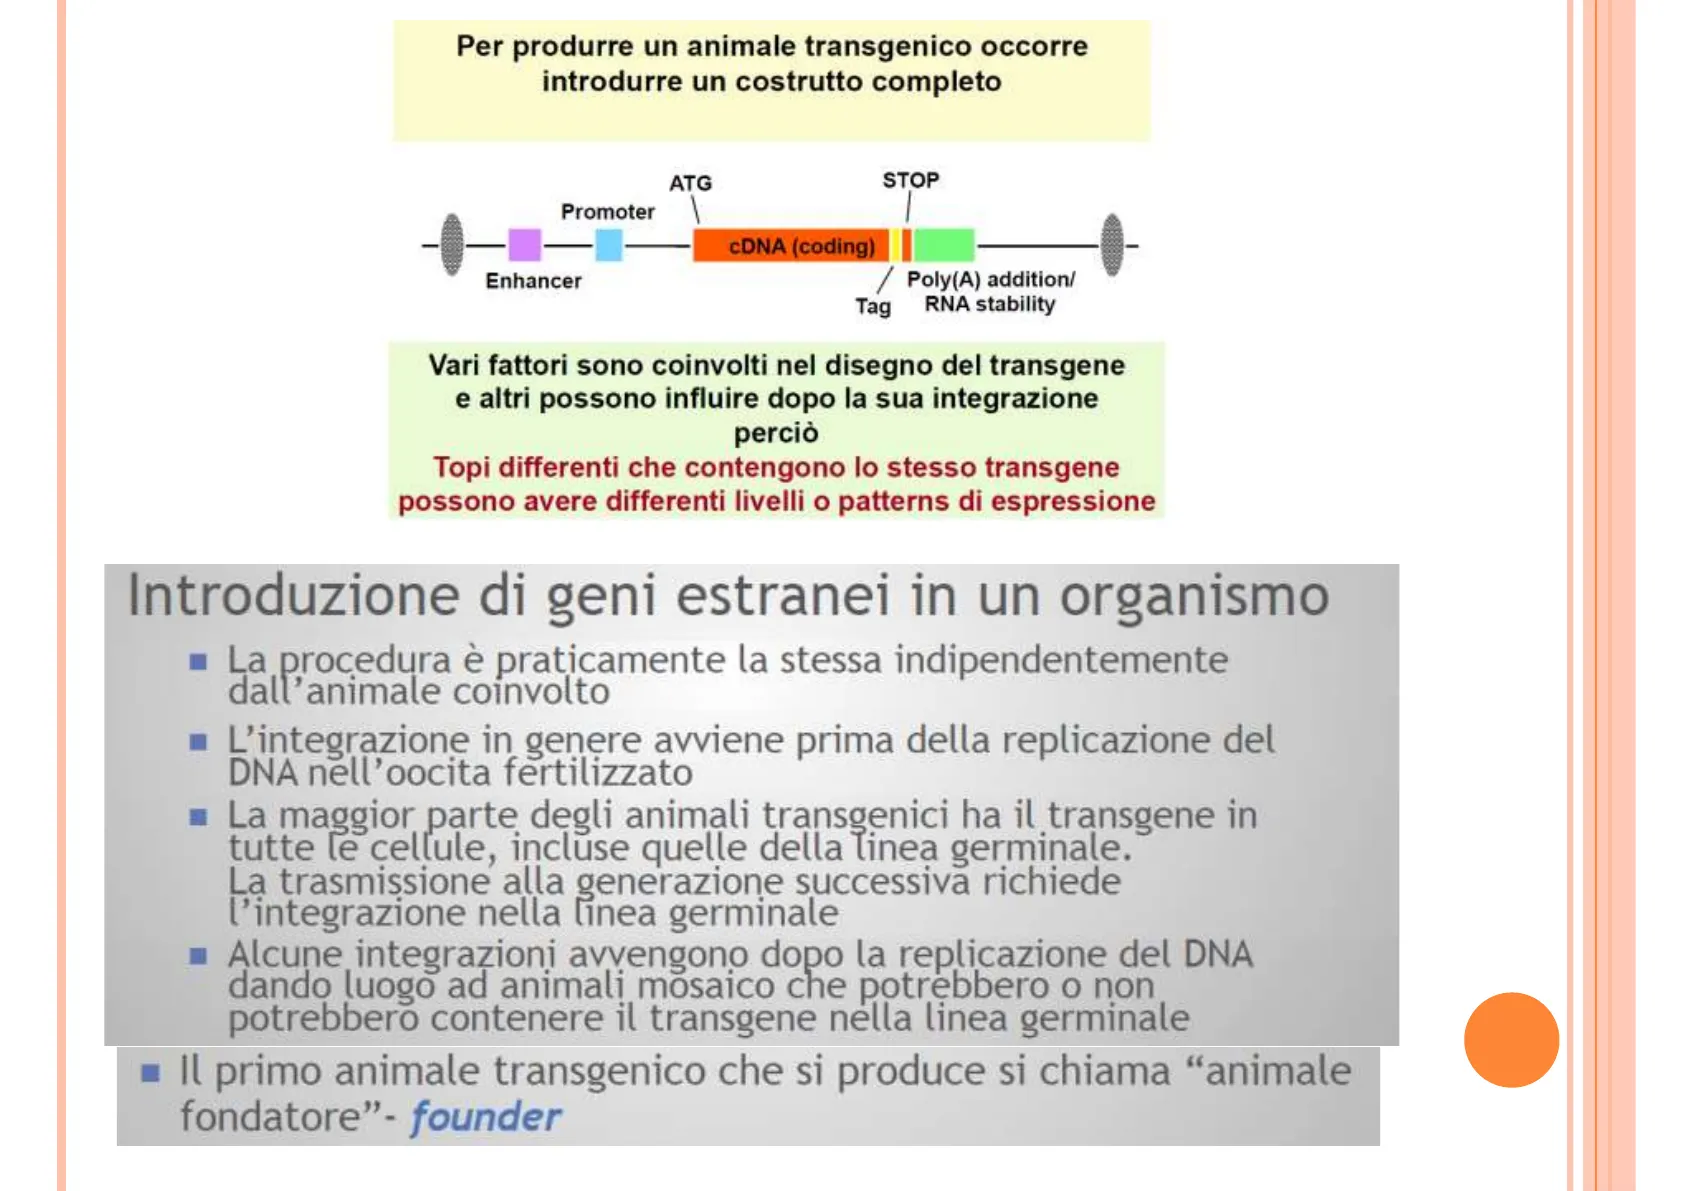
FROM MOUSE TO HUMANPer produrre un animale transgenico occorre
introdurre un costrutto completo
ATG
STOP
Promoter
cDNA (coding)
Enhancer
1
Tag
Poly(A) addition/
RNA stability
Vari fattori sono coinvolti nel disegno del transgene
e altri possono influire dopo la sua integrazione
perciò
Topi differenti che contengono lo stesso transgene
possono avere differenti livelli o patterns di espressione
Introduzione di Geni Estranei
Introduzione di geni estranei in un organismo
La procedura è praticamente la stessa indipendentemente
dall'animale coinvolto
- L'integrazione in genere avviene prima della replicazione del
DNA nell'oocita fertilizzato - La maggior parte degli animali transgenici ha il transgene in
tutte le cellule, incluse quelle della linea germinale.
La trasmissione alla generazione successiva richiede
l'integrazione nella linea germinale
Alcune integrazioni avvengono dopo la replicazione del DNA
dando luogo ad animali mosaico che potrebbero o non
potrebbero contenere il transgene nella linea germinale
Il primo animale transgenico che si produce si chiama "animale
fondatore"- founder
Il Topo come Modello
Il topo è l'animale più utilizzato: PERCHE' IL TOPO?
- Mammifero, progenitore comune si è separato 80 milioni di anni
fa - Lo sviluppo embrionale utilizza geni omologhi ai geni utilizzati
nell'uomo - L'ablazione di un gene può provocare una patologia simile a
quella provocata dalla mutazione del gene ortologo umano - La risposta e la tossicità in seguito a terapia sono predittive della
reazione che si osserverà nell'uomo - La genetica è ben conosciuta ed i ceppi sono bene caratterizzati
- La stabulazione è poco ( !!! ) costosa
- Possibilità di usare ceppi inbred
Human
80
Mouse
310
Vertebrates
Chicken
360
450
Xenopus
fnvortabrutus
Zebrafish
990
Drosophila
Q
C.elegans
The MOUSE
Life span: approx. 2.5 years
Gestation : 18-20 days
Litter size: 6 to 15
Generation time: three months
Several inbred and outbred strains
Cost per mouse 10/100 euro
Housing cost
Large enough for physiological studies
Genomic database
Over 90% identical to human genome
Most advanced genetic technologies
Topi Ingegnerizzati (GEM)
Topi ingegnerizzati (GEM) per:
- Studiare la funzione genica
- Studiare lo sviluppo embrionale
- Modificare pathways specifici
- Riprodurre
specifiche
modificazioni
genomiche - Riprodurre modelli di malattie genetiche
- Sviluppare prevenire e modulare i tumori
- Testare le influenze ambientali
- Testare le strategie terapeutiche
- Produrre cellule e organi per studi in
vitro - Esprimere
£
e/o
secernere
(farmacologia - bioreattori)
proteine
Vantaggi e Svantaggi dei GEM
Vantaggi dei GEM
rispetto
agli
approcci in vitro:
- Studiare
il
gene
nel
contesto
dell'animale intero - Effetti sullo sviluppo embrionale
- Studiare i vari stadi di progressione
neoplastica - Studiare le interazioni tra i tessuti
- Studiare le interazioni genetiche
- Strumento per test pre-clinici
Svantaggi: un topo è solo un topo!
Ceppi Inbred
Why inbred?
Inbred mice are identical materials across time and space
The genetic uniformity ensures reproducible results
like identical twins
우
Inbreeding for more
than 20 gen, results
in uniform genome
>99%
Storia del Topo Inbred
Abbie Lathrop "The Mouse Lady"
The 100 years' history of the inbred mouse
Long history of laboratory mice
China
-
Japanese
fancier
-
English
fancier
Little
1921
prior to
1937
1947
English fancier
Dunn
Russell
Jax
129 ES cells
1928
1945
1948
Little
Little
Jax
Castle
1909 -Tyzzer
1929-30
*1948
DBA/2 Acoustic
seizure
Strong
C3H Mammary tumor
Little Carnegie
Institution
CBA Mammary tumor
Bittner
A Lung tumor
1927
Furth Rhoades Lynch
AKR Leukemia
1928-36 1936-40 1940
BALB/c Immunity
...
Ohio
breeder
1913-Little - MacDowell _ Snell
1922
-1935
Mishima
1979
Moriwaki
MSM Wild-derived
Lathrop was born in 1868 in Illinois. She started breeding rats and mice for
hobbyists and pet owners in Massachussetts. She also raised ferrets, rabbits,
and guinea pigs. Her farm grew to hold over 11,000 mice at one point. Her
breeding records later proved useful for researchers. Lathrop began selling
rodents to scientific researchers.
In 1908 Lathrop found that unusual skin lesions were developing in some of her
mice. She sent samples to scientists and corresponded with experimental
pathologist Leo Loeb, who identified the lesions as malignant. Lathrop began
developing inbred strains around 1910. Loeb and Lathrop performed
experiments at her farm and the pair authored 10 journal articles from 1913 to
1919, including those published in the Journal of Cancer Research and the
Journal of Experimental Medicine. Mammalian geneticist William Castle
purchased some of Lathrop's mice in 1902. He trained C. Little who bred
C57BL/6J ("Black 6") from Lathrop's mouse number 57. Black 6 became the
most frequently used strain of laboratory mouse
Dr. W.E. Castle Dr. C.C. Little Dr. L.C. Strong Dr.Moriwaki
Jax
C57BL/6 Standard strain
.
Lathrop
1903-1915
Heston-
Strong
1921
Abbie Lathrop
Bagg
Analisi della Funzione Genica
Analisi della funzione genica dal genotipo al fenotipo:
transgenosi e gene targeting
Il Mouse Genome Sequencing Consortium
Il Mouse Genome Sequencing Consortium
All'inizio nel 1990, il "Human Genome Project" incluse il topo come uno dei 5 organismi di cui si
doveva sequenziare il genoma.
Nel 1999, tre maggiori centri di sequenziamento (The Wellcome Trust Sanger Institute, The
Whitehead Center for Genome Research e Washington University Genome Sequencing Center)
promossero l'avvio del sequenziamento del genoma murino, sotto il titolo di Mouse Genome
Sequencing Consortium (MGSC). Nel 2002, il MGSC comprendeva scienziati di 26 istituzioni in
6 nazioni.
Dicembre 2002: pubblicazione del genoma del topo
Il Mouse Genome Sequencing Consortium pubblicò con
l'aiuto di equipe internazionali una sequenza ed analisi di
alta qualità del genoma del ceppo di topo C57BL/6J. La
dimensione stimata è di circa 2.5 Gb, leggermente più
piccola del genoma umano, con poco meno di 30,000 geni.
Circa il 40% del genoma del topo e dell'uomo possono essere
direttamente allineati tra loro, e più dell'80% dei geni
umani hanno il corrispondente gene nel genoma murino.
Altri lavori scientifici diedero numerosi dettagli sul make-
up genetico del topo, ed attraverso il lavoro della RIKEN
Genome Science Laboratory in Giappone, molti dati
essenziali sono stati resi disponibili.
Decoding Mouse Genome in 2002
The life
history of
the mouse
in genetics
nature
manin
U
A 0 .
TO
A
nature
C
A
Nature 420, No.6915, 5 Dec 2002
Il Genoma del Topo
Il Genoma del topo
99% dei geni del topo hanno un omologo nel genoma umano
96% dei geni ortologhi murini si trova nel genoma umano in un simile
intervallo sintenico conservato
Ortologo: un gene in due o più specie che si è evoluto da un comune gene
ancestrale.
The Mouse Genome
Gene counts in human and mouse genomes
Predicted transcripts
27,048
29,201
Predicted genes
22,808
22,011
Known cDNAs
17,152
12,226
New predictions
5,656
9,785
Mean exons/transcript
8.7 (6)
8.4 (6)
Total predicted exons
198,889 213,562
Metodo di Inserzione del DNA
1º METODO:
Utilizzo di zigoti appena fecondati
Metodo di inserzione del DNA:
microiniezione
1
Tutte le cellule dell'organismo hanno
un genoma modificato
Nucleolus
Zona pellucida
Negative
pressure
Cell membrane
Female pronucleus
Polar body
DNA injection
into male
pronucleus
Coppie da Incrociare
Sono richiesti tre diversi tipi di coppie da incrociare
1º paio : Maschio fertile + femmina in superovulazione
- Maschio fertile (si cambia regolarmente)
- Femmina in superovulatione = femmina immatura che viene indotta a
superovulare
FSH nel giorno 1
Gonadotropina corionica umana (LH) nel giorno 3 - Incrocio nel giorno 3
- Gli oociti fertilizzati vengono microiniettati con un costrutto di DNA estraneo
nel giorno 4 - Gli oociti microiniettati sono trasferiti nell'ovidotto di una madre surrogato
alla fine del giorno 4
2º paio : Maschio sterile + madre surrogato - Maschio sterile (vasectomia)
- Madre surrogato = si deve accoppiare per essere un recipiente adatto alle
uova iniettate
= Incrocio nel giorno 3
= Gli oociti microiniettati provenienti dalla coppia 1 vengono trasferiti
nell'ovidotto della madre surrogato alla fine del giorno 4 - Gli embrioni si impiantano nella parete uterina e nascono 19 giorni dopo
(tecniche di Southern blotting confermano la presenza ed il numero di copie
del transgene)
3º paio : genitori adottivi
« Maschio fertile + femmina incrociata in modo da avere dei cuccioli lo stesso
giorno della madre surrogato - I genitori adottivi possono essere utili se dovesse essere necessario un parto
cesareo della madre surrogato
우
Mate mice
Eggs
Sperm
Wash fertilized eggs
out of oviducts
Pronuclei
Gene of
interest
Fertilized egg
1
Microinject foreign
DNA into pronucleus
Suction pipette
holding egg
Implant eggs into
pseudopregnant
mouse
Pseudopregnant
mouse
Offspring
DNA analysis
1
Presence of
- transgene shown
'by PCR fragment
Integrazione del Transgene nel Genoma
Integrazione di un transgene nel genoma
= In genere il transgene si inserisce in un cromosoma dando origine ad un
eterozigote
- 50% di probabilità di passare il transgene alla progenie
· Due topi eterozigoti, incrociati possono dare origine ad un omozigote che
contiene il transgene in doppia copia
- 100% di probabilità di passare il transgene alla progenie
= Molti transgeni sono stabilmente trasmessi per molte generazioni senza
riarrangiamenti
Tandem
repeats
Dispersed
repeats
(Hig & Cursos 2000)
Meccanismi di Integrazione del DNA
Meccanismi di integrazione del DNA
- Molecole lineari si integrano più efficientemente di molecole circolari (-5x)
- Una volta nell'oocita, le molecole lineari circolarizzano
# Di solito tutte le molecole che si integrano lo fanno nello stesso cromosoma e nello
stesso sito
- Copie multiple, in genere, si arrangiano in tandem, head-to-tail
- La grandezza delle molecole di DNA non è un parametro fondamentale (0.7 - 50Kb)
- La concentrazione e la purezza del DNA iniettato lo sono (massimo 1-3 mg/ml)
Ipotesi per l'integrazione del DNA - Le estremità del DNA lineare iniettato si integrano in prossimità di rotture che
avvengono spontaneamente nel cromosoma - Molecole iniettate che hanno circolarizzato probabilmente ricombinano fra di
loro e con le copie integrate per generare tandem, head-to-tail - La ricombinazione è probabilmente favorita dall'alta concentrazione locale di
DNA e da proprietà speciali come l'assenza di una normale struttura della
cromatina - Il numero di rotture cromosomiche è presumibilmente limitante e spiega il basso
numero di eventi di integrazione e perché diverse molecole di DNA di solito
vengono integrate nello stesso sito
Non hai trovato quello che cercavi?
Esplora altri argomenti nella Algor library o crea direttamente i tuoi materiali con l’AI.
